
Иммуноморфологические особенности формирования гнездной алопеции
Научный консультант ИНСТИТУТА ТРИХОЛОГИИ ®
Сербiна, I. М. Iмуноморфологічні особливості формування гніздової алопеції // ДЕРМАТОЛОГІЯ ТА ВЕНЕРОЛОГІЯ —№ 3 (73) — 2016 стр. 52-60
Введение
Полученные к настоящему времени данные о механизмах развития гнездной алопеции (ГА) свидетельствуют о том, что в основе патогенеза этого заболевания лежат клеточно-опосредованные местные иммунные реакции в условиях нарушения иммунной толерантности волосяных фолликулов (ВФ), обусловленные генетическими факторами и экзогенными триггерами [4, 6, 10]. Гистологические и иммуногистохимические (ИГХ) исследования демонстрируют наличие местной тканевой воспалительной реакции вокруг ВФ, при этом пери- и интрафолликулярные клеточные ответы свидетельствуют об иммунной атаке против неизвестного антигена волосяного фолликула [5, 7]. Т-лимфоциты, а именно CD4+ и CD8+, составляют основную массу клеток воспалительного инфильтрата и, очевидно, играют ключевую роль в патогенезе ГА. Под действием активированных Т-хелперов происходит повышенная продукция провоспалительных цитокинов, а также каскад дальнейших иммунопатологических процессов, приводящий к формированию неспецифического аутоиммунного воспаления [1, 2, 11, 12]. Полногеномные анализы ассоциаций показывают, что на определённом этапе развития ГА активность могут проявлять провоспалительные факторы и лиганды, стимулирующие NK-клетки и индуцирующие утрату иммунной привилегии ВФ [13, 15]. Литературные данные, касающиеся описания патоморфологической картины ГА, противоречивы, недостаточно полно освещают характер распределения клеток инфильтрата и их иммунный фенотип, поскольку не учитывают фазу болезни [8, 9, 11, 12].
Поэтому целью нашего исследования стало изучение морфологических и ИГХ особенностей острой и хронической стадий ГА и уточнение патогенеза заболевания на основании полученных данных. В задачи исследования входило определение распределения клеток CD4+, CD8+, CD68+, CD56+, профилей провоспалительных цитокинов IL-1, IL-6, TNF-α в очагах ГА при острой и хронической стадиях заболевания.
Материалы и методыИзучены биоптаты кожи скальпа 14 больных с клиническим диагнозом ГА, подтверждённым гистологически и дерматоскопически. В исследовании приняли участие 8 женщин и 6 мужчин в возрасте от 20 до 45 лет. В качестве контроля использовали биоптаты кожи 5 здоровых людей, взятые с волосистой части головы во время пластических операций. Исследование проводили после подписания пациентом информированного согласия в соответствии с положением, регулирующим медицинские исследования.
Согласно данным литературы, гистологические параметры ГА не коррелируют с клинико-анамнестическими данными, такими как количество и размер очагов, сопутствующая патология и др., а зависят только от длительности заболевания и активности патологического процесса [11, 14]. В связи с этим мы также учитывали только клинические и дерматоскопические параметры активности ГА и её длительность. С активной стадией и длительностью заболевания или текущего эпизода в среднем от 2-3 недель до 6 мес. наблюдались 7 пациентов. Хроническая стадия заболевания длительностью от 6 мес. до 6 лет и более констатирована у остальных 7 больных. Все пациенты не получали лечения по поводу ГА в течение 6 мес. и более.
Образцы кожи из очагов облысения брали с помощью одноразового punch-биоптата диаметром 4 мм. После взятия биопсии материал фиксировали в 4 % растворе формалина в течение 48 ч и заливали в парафин. Из парафиновых блоков готовили серийные срезы толщиной 4-5 мкм. С целью обзорной окраски гистологические срезы окрашивали гематоксилином и эозином. ИГХ исследование проводили по стандартизованной методике с использованием серийных парафиновых срезов, помещённых на адгезивные стёкла, покрытые полизином («Menzel-Glaser», Германия), и реактивов компании DAKO. ИГХ панель включала следующие антитела: CD4 (Clone 4B12), CD8 (Clone С8/144В), CD68 (Clone PG-M1), CD56 (Clone 123C3). Провоспалительные цитокины: TNF-α, IL-1, IL-6. Система визуализации EnVisionTM FLEX+, Mouse, High pH (Link), Code K8012 на автостейнере фирмы DAKO.
Интенсивность цитоплазматической экспрессии CD68, CD56, TNF-α, IL-1, IL-6 оценивали полуколичественным методом на основании интенсивности окраски по следующей схеме: слабая экспрессия, умеренная и выраженная. CD4, CD8 – мембранная реакция. Морфометрическое исследование маркеров включало подсчёт положительных клеток в 5 полях зрения при увеличении 200 с помощью программы DP SOFT. Просмотр и цифровые фотографии микропрепаратов осуществляли с помощью светового микроскопа «Olympus CX-4».
Дерматоскопическое исследование проводили с помощью компьютерной диагностической программы и видеодерматоскопического оборудования Aramo SG (Корея), позволяющего получать изображения при увеличении 60 и 200. Исследование включало определение основных дерматоскопических признаков ГА (жёлтые точки, чёрные точки, дистрофичные волосы в форме знака восклицания, веллюс) [4].
Результаты и их обсуждение
Пациенты с активной стадией заболевания жаловались на усиленное выпадение волос, сопровождавшееся формированием очагов облысения; субъективно ощущались симптомы в виде умеренного зуда, жжения, чувства «ползания мурашек» на коже скальпа, где позже формировались очаги алопеции. При клиническом осмотре отмечались такие симптомы, как: наличие очагов облысения с чёткими границами, с признаками гиперемии, в самих очагах и по краю – волосы, обломанные на высоте 1-2 мм; при проведении теста натяжения волос (pull test) на границе очагов выявлялась зона расшатанных волос шириной около 0,3-1 см, в которой легко эпилировались телогеновые или дистрофичные волосы. Хроническая стадия ГА характеризовалась отсутствием роста волос, субъективных жалоб, связанных с нарушением или изменением чувствительности кожи в очагах облысения. Клиническая картина заболевания имела незначительные симптомы: кожа в очагах облысения была обычной окраски и слегка гипотрофична, устья фолликулов не визуализировались, зона расшатанных волос отсутствовала.
При дерматоскопическом исследовании количество жёлтых точек было наибольшим у больных с активной стадией ГА (24,3±7,2), достоверно снижалось в 1,4 раза при хронической стадии (16,5±7,3). Дистрофичные волосы в виде знака восклицания (4,9±0,8) и чёрные точки (3,5±0,7) были представлены только при активности патологического процесса. Веллюсные волосы, напротив, отсутствовали у больных с прогрессирующим течением дерматоза, появлялись в хроническую стадию (2,8±0,2).
При анализе гистологической картины кожи волосистой части головы при ГА обращали внимание на эпидермис, дерму и ВФ, микроциркуляторное русло. Оценивали общие морфологические процессы при ГА, такие как наличие и распределение воспалительного инфильтрата, наличие склероза, изменения эпителия фолликулов, присутствие волоса в ВФ. Выявлено, что при различных стадиях ГА структурные изменения неоднородны и представлены воспалительно-дистрофическими процессами различной степени выраженности.
В активной стадии ГА выявлялись неравномерно утолщённый эпидермис, особенно вблизи поверхностных устьев ВФ, акантоз, умеренный гиперкератоз и утолщение зернистого слоя до 2-3 рядов, единичные вакуолизированные эпителиоциты, умеренный межклеточный отёк, гиперхромия ядер базальных клеток. В дерме под эпидермисом очагово отмечалась умеренная лимфогистиоцитарная инфильтрация с примесью нейтрофилов, разрыхление коллагеновых волокон, уменьшение количества капилляров, повышенная проницаемость сосудистой стенки, сопровождавшаяся периваскулярным отёком.
В очагах поражения находились мелкие ВФ с деформацией волосяной луковицы, соответствовавшие IV фазе анагена или стадиям катагена, кеногена и телогена. В большинстве ВФ волосы отсутствовали. В анагеновых фолликулах наблюдались множественные фрагменты волосяных стержней. В биоптатах кожи, взятых в зоне расшатанных волос, устья волосяных фолликулов расширены. Однако встречались дистрофичные терминальные волосы в фазе анагена, вокруг которых определялся воспалительный инфильтрат. Наружное и корневое влагалища имели нарушения структуры с отделением соединительнотканной сумки, в которых отмечались выраженные дегенеративные изменения. Эпителий волосяной луковицы был с признаками пролиферации, дис- и паракератоза, немногочисленными клетками с внутриклеточным отёком. Верхние слои ВФ характеризовались отсутствием гранул кератогиалина. Перифолликулярно определялись лимфо-лейкоцитарные и гистиоцитарные инфильтраты. Воспалительная инфильтрация проникала в наружное корневое влагалище волосяной луковицы (рис. 1). В некоторых случаях отмечалась резко выраженная лимфолейкоцитарная и макрофагальная инфильтрация как вокруг фолликулов, так и в сосочковом и сетчатом слое дермы.
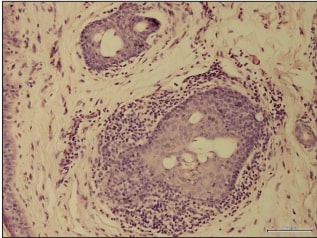
Рис. 1. Активная стадия. Пролиферация эпителиоцитов деформированного волосяного фолликула; перифолликулярная воспалительная инфильтрация. Окраска гематоксилином и эозином. Увеличение: об. 40, ок. 10.
При анализе биоптатов кожи больных с хронической стадией ГА преобладали фибропластические и атрофические процессы. Эпидермис также был неравномерно утолщён, отмечались более выраженный акантоз, пара- и гиперкератоз, пролиферация эпителия базального слоя. Выявлялись скудные перифолликулярные и периваскулярные инфильтраты, состоявшие из лимфоцитов, гистиоцитов и плазмоцитов, перифолликулярный и периваскулярный склероз, склероз дермы с утолщением коллагеновых волокон и наличием фиброзных тяжей, отёк дермы. Стенки большинства сосудов утолщены вплоть до облитерации. В редких случаях наблюдались явления ангиогенеза. Определялось уменьшение количества ВФ, их атрофия. В некоторых ВФ обнаруживали тонкий стержень волоса, в котором меланин и меланоциты из волосяной луковицы исчезали (рис. 2).
В группе пациентов с активной стадией ГА в воспалительном инфильтрате дермы исследуемых полей зрения достоверно увеличивалось количество CD4+ Т-лимфоцитов (15,3±0,12 клетки) и CD8+ Т-лимфоцитов (25,1±0,26 клетки) по сравнению с контролем (р < 0,01). Иммунорегуляторный индекс (ИРИ) составлял (0,61±0,06), что было достоверно ниже контроля (р < 0,01) (1,08±0,08). CD4+ Т-лимфоциты локализовались рассеянно, преимущественно вокруг фолликулов и сосудов. Иногда встречались в дерме под эпидермисом. Цитотоксические CD8+ Т-лимфоциты выявлялись в виде компактных скоплений также вокруг фолликулов и сосудов, реже в дерме и единичные клетки в межэпителиальной зоне эпидермиса. Причём более компактная экспрессия CD8+ Т-лимфоцитов локализовалась в поверхностных фолликулах, в которых отсутствовали волосяные стержни (рис. 3).
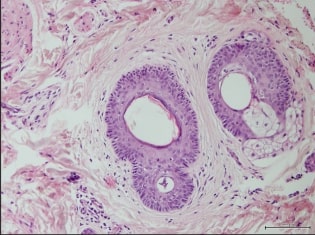
Рис. 2. Хроническая стадия. Выраженный перифолликулярный склероз. Окраска гематоксилином и эозином. Увеличение: об. 40, ок. 10.
При хронической стадии ГА анализ экспрессии маркеров лимфоцитов показал достоверное снижение количества положительных CD4+ и CD8+ Т-лимфоцитов по сравнению с показателями в активной стадии ГА – (11,7±0,22) (CD4+) и (15,7±0,18) (CD8+) положительных клеток (р < 0,01). При этом ИРИ увеличился по сравнению с показателем в активной стадии и составил (0,75±0,02). Однако значение этого показателя было недостоверным (р > 0,01).Экспрессия CD56+ выявлялась в основном в воспалительном инфильтрате при активной стадии ГА. Наибольшее количество положительных CD56+ клеток в зоне воспалительного инфильтрата наблюдалось вблизи сохранённых фолликулов, меньшее – вблизи повреждённых фолликулов, что составляло в среднем (18,00±2,46) положительных клеток. Интенсивность цитоплазматического окрашивания расценивалась как слабая (рис. 4). При хронической стадии ГА количество положительных CD56+ клеток достоверно уменьшалось (7,56±0,98) по сравнению с активной стадией (р < 0,01), но было выше, чем в группе контроля. Отмечалась слабая реакция в эпителии и более интенсивная в нервных стволах.
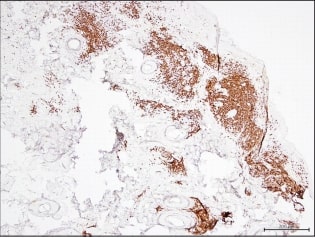
Рис. 3. Фрагмент кожи. Активная стадия ГА. Экспрессия CD8+ Т-лимфоцитов, локализующихся перифолликулярно и периваскулярно, в дерме. ИГХ реакция. Система визуализации FLEX. Увеличение: об. 4, ок. 10.
С целью детального изучения уровня и качества макрофагального компонента воспалительного инфильтрата в коже больных ГА проведена ИГХ реакция с маркером макрофагальной генерации – CD68+. При анализе ИГХ реакций в биоптатах кожи макрофаги располагались рассеянно в пределах воспалительного инфильтрата, выстраивались цепочкой по базальному слою фолликулярного эпителия, единичные макрофаги появлялись в межэпителиальной зоне. CD68+ клетки характеризовались гранулярным окрашиванием цитоплазмы, имели различные размеры, преимущественно крупные, с выраженным интенсивным окрашиванием цитоплазмы. При активной стадии ГА количество CD68+ макрофагов составляло (29,20±4,06). При хронической стадии ГА количество макрофагов уменьшалось, снижались интенсивность окрашивания цитоплазмы и её гранулярность. Количество CD68+ макрофагов составляло (16,20±2,34). Показатели при активной и хронической стадии достоверно изменены относительно контроля и между группами (р < 0,01).
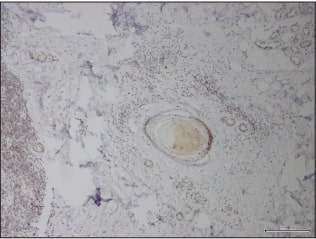
Рис. 4. Фрагмент кожи. Активная стадия ГА. Экспрессия CD56 в клетках воспалительного инфильтрата вблизи сохранённого волосяного фолликула. ИГХ реакция. Система визуализации FLEX. Увеличение: об. 20, ок. 10.
Содержание TNF-α при активной стадии составляло (6,60±0,68) клетки в исследуемых полях зрения и (4,50±0,38) клетки при хронической стадии ГА. Эти данные статистически достоверно отличаются относительно контроля (1,10±0,29) и между группами (р < 0,01). При анализе экспрессии с маркером IL-1 также отмечалась цитоплазматическая экспрессия в макрофагах и лимфоцитах при активной стадии ГА. При этом количество IL-1 составляло (3,70±0,45) клетки в исследованных полях зрения. Экспрессия IL-1 при хронической стадии – (2,10±0,34) клетки. Оба показателя достоверно отличались от показателя в контрольной группе (0,70±0,08, р < 0,01) и недостоверно отличались между собой (р > 0,01). Подобная ИГХ картина наблюдалась при анализе микропрепаратов с маркером IL-6, который при активной стадии ГА проявлялся цитоплазматическим окрашиванием макрофагов и лимфоцитов и составлял 4,20±0,45 клетки, что достоверно выше (р < 0,01), чем при хронической стадии – (2,70±0,36). Данные показатели достоверно (р < 0,01) отличались от контроля (1,30±0,08).
ГА характеризуется нарушением цикла роста ВФ: воспалительные клетки (CD8+ Т-клетки, CD68+, NK-клетки и др.) атакуют анагеновые волосяные фолликулы. Увеличение количества воспалительных клеток вокруг ВФ приводит к их миниатюризации и сокращению цикла роста волос с переходом в кеноген. Степень выраженности инфильтрата коррелировала с остротой патологического процесса и была более выраженной в образцах с активной стадией ГА. При хронической стадии ГА преобладали фибропластические и местами атрофические процессы. Кроме фибробластов важную роль в процессах фиброгенеза играют и макрофаги, одни из основных цитокинпродуцирующих клеток организма. В основе патогенеза раннего фиброзирования может лежать неконтролируемый иммунный ответ, связанный с гиперцитокинемией [3]. При хроническом воспалении у больных ГА основную роль играют иммунокомпетентные клетки, такие как CD68+ с примесью единичных лимфоцитов CD8+. При активности ГА увеличивалось количество CD8+ цитотоксических Т-лимфоцитов в коже пациентов. По данным ИГХ анализа, активированные CD8+ Т-клетки могут проникать в ВФ, в то время как CD4+ Т-клетки почти исключительно расположены в перифолликулярной области, что может легко нарушить рост волос. Соотношение CD4/CD8 достоверно снижалось относительно контроля, что объясняет снижение местного клеточного иммунитета в очаге поражения. Кроме того, повышенное количество макрофагов в воспалительном инфильтрате кожи свидетельствует о наличии иммунного ответа и персистенции хронического воспаления, что может быть диагностическим маркером не только классических проявлений ГА, но и иметь значение при оценке эффективности лечения.
Единичные NK-клетки наблюдались вокруг здоровых анагеновых ВФ, фолликулы в очагах повреждения при ГА демонстрировали видимые скопления CD56+. Следует отметить выраженное наличие положительных NK-клеток (CD56+) в воспалительном инфильтрате при активной стадии ГА. Последние исследования выявили гиперэкспрессию ULBP3 (цитомегаловирус-связывающий белок) на 6 хромосоме (6q25) при ГА, кодирующего активацию лиганда NK-клеточного рецептора NKG2D натуральных киллеров и инициирующего аутоиммунный ответ. ULBP3-кодируемые белки в больших количествах содержатся в повреждённых ВФ. Белки привлекают NK-клетки, содержащие рецепторы NKG2D. При этом в различных органах существует общий механизм, отвечающий за экспрессию сигнальных белков для рецепторов NKG2D, запускающий процесс уничтожения клетки. Эти гены отвечают за развитие других аутоиммунных заболеваний, таких как ревматоидный артрит и диабет 1 типа. Данные открытия рассматриваются как перспективные объекты в изучении терапии, в том числе и при ГА [13, 15].
Высокое содержание лимфоцитов CD8+ за счёт кооперации с Т-хелперами (CD4+) и макрофагами формирует опосредованный Т-клетками цитотоксический иммунный ответ, ассоциированный с NK-клетками [15]. Воспалительный лимфогистиоцитарный инфильтрат располагается не только вокруг ВФ, но может проникать внутрь клеток волосяной луковицы и окружать сосуды, что отражает морфогенез аутоиммунного воспаления. Иммунный цитолиз клеток ВФ осуществляется не только за счёт Т-лимфоцитов, но и провоспалительных цитокинов, таких как TNF-α, IL-1 и IL-6. TNF-α – сильный индуктор апоптоза, подавляет пролиферацию кератиноцитов. Цитокины в настоящее время могут рассматриваться как медиаторное звено в формировании патофизиологической стадии аутоиммунных реакций при ГА, нарушая механизмы поддержания состояния иммунотолерантности структур ВФ [3, 5]. Исследуемые цитокины продуцируются клетками как лимфогистиоцитарного инфильтрата, так и ВФ при их иммунном повреждении.
Заключение
Таким образом, обобщая данные литературы и нашего морфологического исследования с использованием ИГХ с целью установления фенотипа клеток воспалительного инфильтрата и реакции провоспалительных цитокинов, можно утверждать, что изменения в очаге воспаления зависят от стадии патологического процесса. В активную стадию заболевания определяется массивный воспалительный инфильтрат с преобладанием цитотоксических Т-лимфоцитов, CD56+, CD68+ и повышенным содержанием провоспалительных цитокинов (IL-1, IL-6, TNF-α). Напротив, в хроническую стадию ГА мы наблюдаем минимальную степень клеточного ответа в виде уменьшения воспалительного инфильтрата и перераспределения клеток инфильтрата (CD8+ и CD4+) с преобладанием фибробластических и гистиоцитарных элементов. Содержание провоспалительных цитокинов Th-1 в хроническую стадию ГА также достоверно снижается. Эти изменения отражают смену воспалительной реакции в очаге ГА на репаративные и склеротические механизмы. Отсутствие единого мнения о причинах появления и закономерностях течения ГА делает актуальной проблему изучения звеньев патогенеза этого дерматоза, поскольку полученные данные позволяют разработать патогенетические подходы к терапии с учётом стадии патологического процесса.
1. Насонова Е.Л. Новые направления фармакотерапии ревматических заболеваний – ингибиция интерлейкина 6 и интерлейкина 17 [Текст] / Е.Л. Насонова // Современная ревматология. – 2013. – No 3. – С. 5-14.
2. Сербина И.М. Цитокинопосредованные механизмы формирования гнездной алопеции [Текст] / И.М. Сербина // Научные ведомости БелГУ. Серия: Медицина. Фармация. – 2014. – Т. 28, No 24 (195). – С. 32-38.
3. Соотношение процессов апоптоза, пролиферации, неоангиогенеза и клеточной дифференцировки при иммунном воспалении в очагах гнездной алопеции [Текст] / А.Г. Гаджигороева, Е.А. Коган, Н.Н. Потекаев, Г.П. Терещенко // Клиническая дерматология и венерология. – 2010. – No 2. – С. 23-31.
4. Сучасні методи діагностики нерубцевих алопецій: Метод. рекомендації [Текст] / Л.А. Болотна, І.М. Сербіна, Ю.С. Овчаренко, Ю.В. Качук. – Харків, 2013. – 24 с.
5. Alopecia areata update: part I. Clinical picture, histopathology, and pathogenesis [Text] / A. Alkhalifah, E. Wang, J. Shapiro [et al.] // J. Am. Acad. Dermatol. – 2010. – Vol. 62. – P. 191-202.
6. Clinico etiological study of Alopecia areata [Text] / G. Bharathi, P. Venkata Ramana, K. Sridevi, G. Usha // Journal of Dental and Medical Sciences. – 2015. – Vol. 14, No.6. – P. 29-32.
7. D’Ovidio R. Alopecia Areata: news on diagnosis, pathogenesis and treatment [Text] / R. D’Ovidio // G. Ital. Dermatol. Venereol. – 2014. – Vol. 149. – P. 25-45.
8. Gilhar A. Collapse of Immune Privilege in Alopecia Areata: Coincidental or Substantial? [Text] / A. Gilhar // Journal of Investigative Dermatology. – 2010. – Vol. 130. – P. 2535–2537.
9. Gilhar A. Alopecia areata [Text] / A. Gilhar, A. Etzioni, R. Paus // The New England Journal of Medicine. – 2012. – Vol. 366. – P. 1515-1525.
10. Hordinsky M. Overview of Alopecia Areata [Text] / M. Hordinsky //Journal of Investigative Dermatology Symposium Proceedings. – 2013. – Vol. 16, No. 1. – P. S13-S15.
11. Investigation of the inflammatory mechanisms in alopecia areata [Text] / D.C. Emel, S. Ekin, U. Meltem [et al.] // Am. J. Dermatopathol. – 2009. – Vol. 31. – P. 53-60.
12. Ito T. Recent Advances in the Pathogenesis of Autoimmune Hair Loss Disease Alopecia Areata [Text] / T. Ito // Clinical and Developmental Immunology. – 2013. – ID348546. – P. 1-6.
13. Petukhova L. Genomewide association study in alopecia areata implicates both innate and adaptive immunity [Text] / L. Petukhova // Nature. – 2010. – Vol. 466. – P. 113-117.
14. Value of transverse section scalp biopsy in alopecia areata - a clinicopathological correlation [Text] / K. Jameel, A. Ejaz, M. Sohail, S.B. Rahman // J. Col. Phys. Surg. Pak. – 2008. – Vol. 18, No. 6. – P. 338-341.
15. Wang E. Etiopathogenesis of alopecia areata: Why do our patients get it? [Text] / E. Wang, J. McElwee // Dermatologic Therapy. – 2011. – Vol. 24. – P. 337-347.
References
2. Serbina, I.M. (2014) Tsitokinoposredo- vannyie mehanizmyi formirovaniya gnezdnoy alopetsii. Nauchnyie vedomosti BelGU. Seriya: Meditsina. Farmatsiya. 28, (24 (195)), 32-38. (in Russian)
3. Gadzhigoroeva, A.G., Kogan, E.A., Pote- kaev, N.N., Tereschenko, G.P. (2010) Soot- noshenie protsessov apoptoza, proliferatsii, neoangiogeneza i kletochnoy differentsirovki pri immunnom vospalenii v ochagah gnezdnoy alopetsii. Klinicheskaya dermatologiya i ven- erologiya. 2, 23-31. (in Russian)
4. Bolotna,L.A., Serbina,I.M., Ovcharenko, Yu.S., Kachuk, Yu.V. (2013) Suchasni metody diahnostyky nerubtsevykh alopetsii: Metod. rekomendatsii. 24. (in Ukrainian)
5. Alkhalifah, A., Wang, E., Shapiro, J. [et al.] (2010) Alopecia areata update: part I. Clini- cal picture, histopathology, and pathogenesis. J. Am. Acad. Dermatol. 62, 191-202.
6. Bharathi, G., Venkata Ramana, P., Sridevi, K., Usha, G. (2015) Clinico etiologi- cal study of Alopecia areata. Journal of Dental and Medical Sciences. 14 (6), 29-32.
7. D’Ovidio, R. (2014) Alopecia Areata: news on diagnosis, pathogenesis and treatment. G. Ital. Dermatol. Venereol. 149, 25-45. 8. Gilhar, A. (2010) Collapse of Immune Privilege in Alopecia Areata: Coincidental or Substantial? Journal of Investigative Dermatol- ogy. 130, 2535-2537.
9. Gilhar, A., Etzioni, A., Paus, R. (2012) Alopecia areata. The New England Journal of Medicine. 366, 1515-1525.
10. Hordinsky, M. (2013) Overview of Alo- peciaAreata. Journal of Investigative Dermatol- ogy Symposium Proceedings. 16 (1), S13-S15.
11. Emel, D.C., Ekin, S., Meltem, U. [et al.] (2009) Investigation of the inflammatory mechanisms in alopecia areata. Am. J. Dermato- pathol. 31, 53-60.
12. Ito, T. (2013) Recent Advances in the Pathogenesis of Autoimmune Hair Loss Disease Alopecia Areata. Clinical and Developmental Immunology. ID348546, 1-6.
13. Petukhova, L. (2010) Genome-wide association study in alopecia areata implicates both innate and adaptive immunity. Nature. 466, 113-117.
14. Jameel, K., Ejaz, A., Sohail, M., Rah- man, S.B. (2008) Value of transverse section scalp biopsy in alopecia areata - a clinicopatho- logical correlation. J. Col. Phys. Surg. Pak. 18 (6), 338-341.
15. Wang, E., McElwee,J. (2011) Etiopatho- genesis of alopecia areata: Why do our patients get it? Dermatologic Therapy. 24, 337-347.